Ciri dan struktur
Associated with leaf spots, blight, and blotches. Leaf spots circular or irregular, pale brown to brown, surrounded with a dark brown margin. Leaf blight brown, surrounded with a dark brown margin. Leaf blotches reddish brown to dark brown. Sexual morph on substrate: Ascomata 75–150 × 80–150 µm (x̄ = 95 × 98 µm, n = 5), solitary, semi-immersed, globose to subglobose, brown, ostiolate. Setae not observed. Sexual morph on PDA: Ascomata 100–200 × 100–190 µm (x̄ = 131 × 123 µm, n = 5), solitary or aggregated, semi-immersed or superficial, globose to subglobose, black. Setae not observed. Peridium 8–38 µm thick (x̄ = 19.1 µm, n = 10), composed of 3–4 layers of thick-walled pseudoparenchymatous cells of textura angularis. Asci 55–70 × 8–11 µm (x̄ = 63 × 9.5 µm, n = 10), operculate, unitunicate, cylindrical to clavate or cymbiform, 6–8-spored. Ascospores 13–23.5 × 4–6.5 µm (x̄ = 17.9 × 5.1 µm, n = 25; L/W ratio = 3.5), uniseriate or biseriate, hyaline, subellipsoidal or oblong, reniform to falcate, somewhat fusiform, slightly curved, smooth-walled, guttulate, aseptate, mostly with obtuse or acute ends. Asexual morph on substrate: Conidiomata 80–150 × 60–140 µm (x̄ = 100 × 90 µm, n = 5), solitary, semi-immersed, globose to subglobose, brown, producing creamy to orange conidial mass. Setae not observed. Asexual morph on PDA: Conidiomata 200–800 µm diam. (x̄ = 350 µm, n = 10), semi-immersed, scattered or aggregated, globose to subglobose, exuding creamy to orange conidial mass. Setae not observed. Conidiophores formed directly from mycelium, hyaline, cylindrical, branched, or unbranched.
Habitat dan peran ekologis
(listed chronologically). Pathogenic on plants; Leaf spots of Ficus edulis in Germany and Limonium spp. in Israel (Weir et al. 2012); Pyrus pyrifolia (Zhang et al. 2015), Dalbergia hupeana (Zhou et al. 2022), Myrica rubra (Li et al. 2022a), Ziziphus mauritiana (Shu et al. 2021), Zamia furfuracea (Manawasinghe et al. 2022), Liriodendron chinense × tulipifera (Wan et al. 2022), Magnolia wufengensis (Yin et al. 2022), Illicium verum (Zhao et al. 2022), Camellia sinensis, Curcuma phaeocaulis, Ilex chinensis, Ligustrum lucidum and Zingiber officinale (Zhang et al. 2023a), and Celosia cristata, Cymbidium sinense and Dendrobium nobile in China (Zhang et al. 2023b); Malus domestica in Uruguay (Casanova et al. 2017; Alaniz et al. 2019); and Nephrolepis cordifolia (Seifollahi et al. 2023) and Rhizophora apiculata in Thailand (Norphanphoun and Hyde 2023). Leaf blotch of Aesculus chinensis in China (Sun et al. 2020) and brown blight of Camellia sinensis in Taiwan (Lin et al. 2023a). Shot-hole on leaves of Prunus sibirica in China (Han et al. 2023). Brown sunken cladode spots of Nopalea cochenillifera in Brazil (Conforto et al. 2017). Anthracnose of Dioscorea spp. in Nigeria (Weir et al. 2012); Pyrus bretschneideri, P. communis and P. pyrifolia in China (Weir et al. 2012; Li et al. 2013; Fu et al. 2019) and Pyrus pyrifolia × P. communis in Korea (Choi and Park 2021); Citrus spp. in China (Huang et al. 2013; Hu et al. 2019) and Iran (Arzanlou et al. 2015; Taheri et al. 2016); Hylocerous undatus and Ziziphus sp. in Thailand (Udayanga et al. 2013); Mangifera indica in Brazil (Lima et al. 2013, 2015), India (Sharma et al. 2013), Korea (Joa et al. 2016), China (Li et al. 2019), Mexico (Tovar-Pedraza et al. 2020), Egypt (Ismail and El-Ganainy 2022) and Taiwan (Wu et al. 2020; Lin et al. 2023b); Rubus glaucus in Colombia (Afanador-Kafuri et al. 2014); Gleditsia caspica in Iran (Arzanlou et al. 2015); Prunus persica in USA (Hu et al. 2015), Korea (Lee et al. 2020) and China (Tan et al. 2022); Camellia sinensis in China (Liu et al. 2015; Wang et al. 2016a; Lu et al. 2018; Shi et al. 2018) and Indonesia (Weir et al. 2012; Liu et al. 2015); Corchorus capsularis (Niu et al. 2016a, 2016b) and Fragaria × ananassa (Han et al. 2016; Jayawardena et al. 2016b; He et al. 2019; Chen et al. 2020; Jian et al. 2021); Aucuba japonica in China (Li et al. 2016) and Korea (Hassan et al. 2023); Annona spp. in Brazil (Costa et al. 2016, 2019); Capsicum spp. in China (Liu et al. 2016; Diao et al. 2017), Thailand (de Silva et al. 2019) and Malaysia (Noor and Zakaria 2018); Nicotiana tabacum in China (Wang et al. 2016b); Carica papaya in India (Saini et al. 2016), Mexico (Marquez-Zequera et al. 2018), Costa Rica (Ruiz-Campos et al. 2022) and Brazil (Vieira et al. 2022); Fatsia japonica in china (Shi et al. 2017); Malus domestica in Iran (Arzanlou et al. 2015) and Korea (Kim et al. 2018, 2020); Anacardium occidentale, A. othonianum and A. humile in Brazil (Veloso et al. 2018, 2021); Juglans regia (Wang et al. 2018; Li et al. 2023a) and Pouteria campechiana in China (Yang et al. 2021); Diospyros kaki in Brazil (Carraro et al. 2019), Philippines (Evallo et al. 2022) and China (Zhang et al. 2023d); Hevea brasiliensis in China (Cao et al. 2019a) and Brazil (Santos de Oliveira et al. 2020); Coffea arabica in China (Cao et al. 2019b) and Puerto Rico (Serrato-Diaz et al. 2020); Salvia greggii in Italy (Guarnaccia et al. 2019); Vitis labruscana and V. vinifera in Korea (Lim et al. 2020); Manihot esculenta in China (Liu et al. 2018) and Brazil (Bragança et al. 2016; Santos de Oliveira et al. 2020); Dendrobium officinale in China (Ma et al. 2019); Cattleya spp. and Phalaenopsis sp. in Brazil (Silva-Cabral et al. 2019); Areca catechu (Cao et al. 2020), Peucedanum praeruptorum (Ma et al. 2020), Crinum asiaticum (Qing et al. 2020), Camellia oleifera (Wang et al. 2020) and Paris polyphylla var. chinensis in China (Zhou et al. 2020); Ceanothus thyrsiflorus, Hydrangea paniculata, Cyclamen persicum and Liquidambar styraciflua in Italy (Guarnaccia et al. 2021); Persea americana in Colombia (Gañán et al. 2015), Israel (Sharma et al. 2017), Mexico (Fuentes-Aragón et al. 2018), New Zealand (Hofer et al. 2021) and Thailand (Armand and Jayawardena 2024); Allium cepa in Brazil (Henrique Lopes et al. 2021); Musa spp. (Huang et al. 2021a), Eichhornia crassipes (Huang et al. 2021b) and Eriobotrya japonica in China (Kuang et al. 2021); Camellia sinensis in Taiwan (Lin et al. 2021); Eucalyptus spp. in South Africa (Mangwende et al. 2021); Amomum villosum (Song et al. 2021), Rubus corchorifolius (Wu et al. 2021), Camellia chrysantha (Zhao et al. 2021), Cyclocarya paliurus (Zheng et al. 2021) and Camellia grijsii (= C. yuhsienensis) in China (Chen et al. 2022); Ziziphus jujuba (= Z. mauritiana) in Taiwan (Duan and Chen 2022); Atractylodes ovata in Korea (Hassan et al. 2022); Cunninghamia lanceolata (He et al. 2022), Prunus salicina (Huang et al. 2022a) and Phoebe sheareri in China (Huang et al. 2022b); Actinidia spp. in China and Japan (Huang et al. 2022c; Poti et al. 2023); Carya illinoinensis (Chang et al. 2022), Macadamia integrifolia (Li et al. 2023b), Luffa cylindrica (Li et al. 2022b), Loropetalum chinense (Qiu et al. 2022), Prunus avium (Tang et al. 2022), Bletilla striata (Wang et al. 2022), Brassica parachinensis (Yu et al. 2022a), Radermachera sinica (Yu et al. 2022b), Arachis hypogaea (Gong et al. 2023), Osmanthus fragrans (He et al. 2023; Sui et al. 2024), Averrhoa carambola (Li and Zhang 2023), Carya cathayensis (Ma et al. 2023), Tetrapanax papyrifer (Tang et al. 2023) and Glycine max in China (Xu et al. 2023).
- Habitat atau konteks temuan
- Informasi belum tersedia pada sumber rilis ini.
- Substrat
- Informasi belum tersedia pada sumber rilis ini.
- Peran atau konteks
- Belum dikategorikan pada rilis ini.
Reproduksi
Associated with leaf spots, blight, and blotches. Leaf spots circular or irregular, pale brown to brown, surrounded with a dark brown margin. Leaf blight brown, surrounded with a dark brown margin. Leaf blotches reddish brown to dark brown. Sexual morph on substrate: Ascomata 75–150 × 80–150 µm (x̄ = 95 × 98 µm, n = 5), solitary, semi-immersed, globose to subglobose, brown, ostiolate. Setae not observed. Sexual morph on PDA: Ascomata 100–200 × 100–190 µm (x̄ = 131 × 123 µm, n = 5), solitary or aggregated, semi-immersed or superficial, globose to subglobose, black. Setae not observed. Peridium 8–38 µm thick (x̄ = 19.1 µm, n = 10), composed of 3–4 layers of thick-walled pseudoparenchymatous cells of textura angularis.
Catatan identitas dan cakupan
- Nama diterima mengikuti Catalogue of Life Base2026-09-11; uraian mempertahankan konsep dan nama sumber aslinya.
- Preserve original treatment localities, hosts and substrate scope. Materials examined describe documented specimens, not the full global range.
- Impor dan terjemahan otomatis belum diperiksa editorial per profil. Struktur reproduktif yang disebutkan tidak membuktikan seluruh siklus hidup diketahui.
- Pengukuran pada uraian mengikuti spesimen, kultur, dan metode sumber; angka tidak diperluas ke semua populasi.
Catatan distribusi dalam narasi mengikuti sumbernya. Dokumentasi spesimen atau foto mengikuti catatan sumber. Bukti wilayah Indonesia dan penilaian konservasi tidak disimpulkan dari gambar.
Melihat dengan konteks
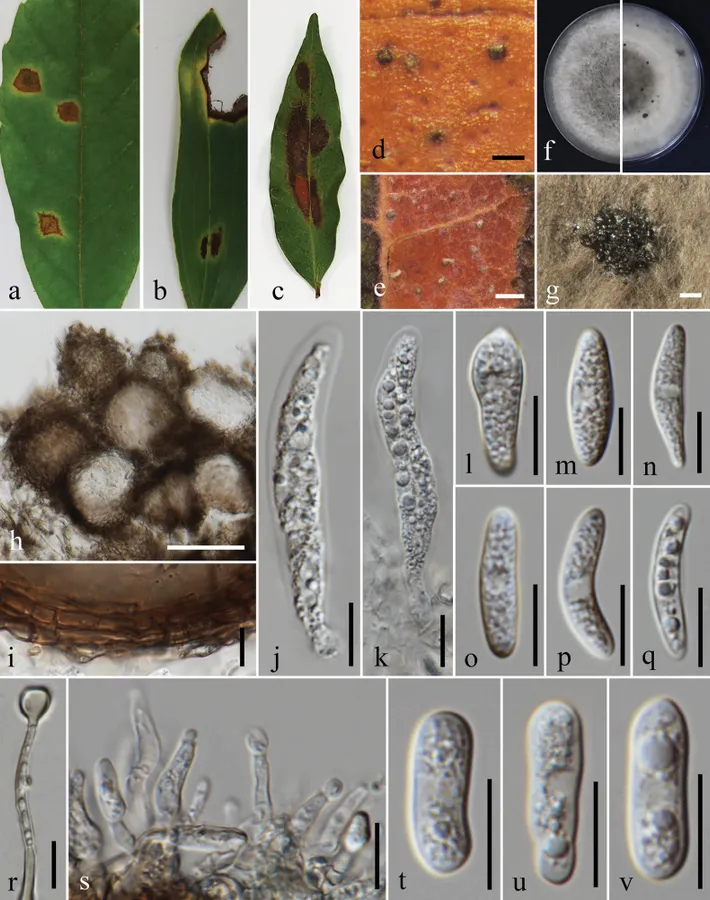
Colletotrichum fructicola. a. Leaf spots (Castanea sp.); b. Leaf blight (Hedychium sp.); c. Leaf blotches (Rhododendron sp.); d. Ascomata on substrate (Rhododendron sp.); e. Conidiomata sporulating on substrate (Hedychium sp.); f. Top and reverse of colony on PDA after 21 d; g. Clusters of ascomata formed on culture; h. Section through ascomata; i. Peridium; j, k. Asci; l–q. Ascospores; r. Chlamydospore; s. Conidiogenesis and developing conidia; t–v. Conidia. Scale bars: 500 μm (d, e, g); 100 μm (h); 10 μm (i–v).
- Jenis
- Pelat ilmiah
- Kredit
- Deecksha Gomdola, Rajesh Jeewon, Eric H.C. McKenzie, Ruvishika S. Jayawardena, Fatimah Al-Otibi, Xia Tang, Yong Wang, Kevin D. Hyde, Li Fu
- Lisensi
- CC BY 4.0
- Sumber media
- Buka entri sumber
Dokumentasi tambahan
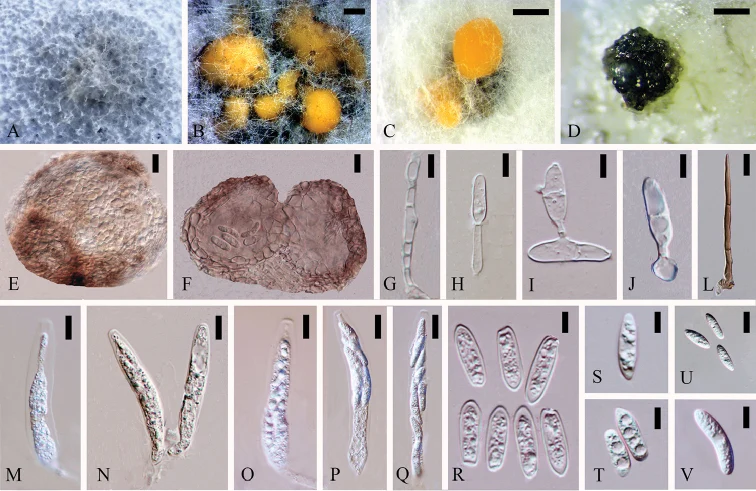
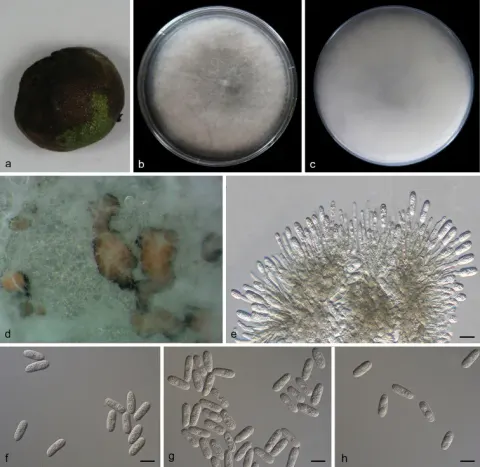
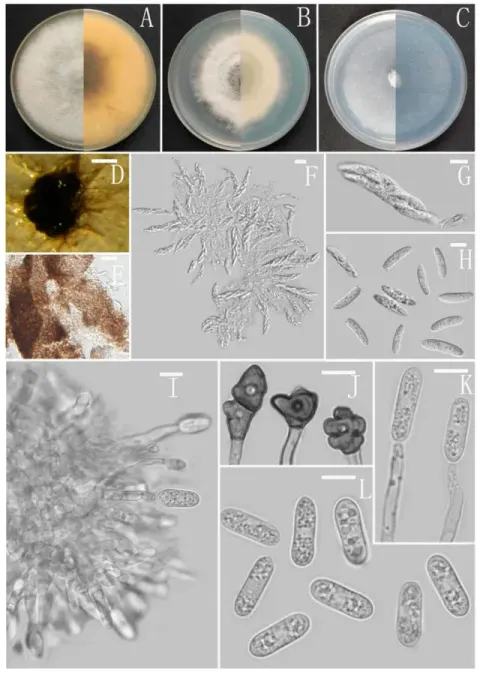
Colletotrichum fructicola. A Colony B Conidiomata and ascomata C, D Conidiomata E, F Ascomata G–J Conidiophores L Setae M–Q Asci R–V Ascospores Scale bars: 500 µm (B–D), 20 µm (E, F), 5 µm (G–J), 10 µm (L), 10 µm (M–Q), 5 µm (R–V).
Kredit dan penggunaan
Xiaoya Ma, Sureeporn Nontachaiyapoom, Ruvishika S. Jayawardena, Kevin D. yde, Eleni Gentekaki, Sixuan Zhou, Yixin Qian, Tingchi Wen, Jichuan Kang
Ukuran dan format gambar disesuaikan tanpa pemotongan, retus, atau penambahan skala. Lisensi sumber dipertahankan.
Sumber profil
- [1] Phylogenetic diversity of Colletotrichum species (Sordariomycetes, Glomerellales, Glomerellaceae) associated with plant diseases in Thailand — Colletotrichum fructicola
- [2] Catalogue of Life Base2026-09-11 — Colletotrichum fructicola
- [3] Dokumentasi visual — Colletotrichum fructicola
- [4] Dokumentasi visual — Colletotrichum fructicola
Rujukan halaman ini
Fungi. Colletotrichum fructicola. Rilis data fungi-2026-10-12-expansion-2. https://fungi-atlas.mgadib.chatgpt.site/jamur/colletotrichum-fructicola/.
Status: impor sumber; pemeriksaan editorial per profil belum selesai. Untuk klaim biologis, gunakan rujukan pada bagian terkait dan periksa konteks sumber aslinya.